


لنفوسیت B چیست؟ – به زبان ساده + وظیفه و مراحل تکامل
- یاد میگیرید فرایند تکامل و تمایز لنفوسیت B چگونه انجام میشود.
- نقش گیرندههای سطحی و BCR را در عملکرد لنفوسیت B بررسی میکنید.
- تفاوت ساختاری و عملکردی B cell و T cell را مقایسه میکنید.
- انواع سلولهای B و نقش سلولهای خاطره را میآموزید.
- مراحل فعالسازی لنفوسیت B و انتقال سیگنال را تحلیل میکنید.
- یاد میگیرید آنتیبادیها چه انواعی دارند و چگونه از بدن دفاع میکنند.

مطالب مجله فرادرس را در جستجوی گوگل سریعتر ببینید


لنفوسیت B چیست؟
گیرنده لنفوسیت B
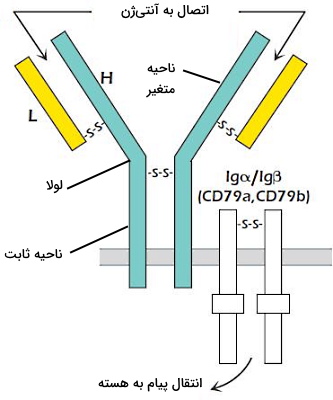
CD21، CD19، CD82 و CD225 پروتئینهای غشایی لنفوسیت B هستند که مستقیم به آنتیژن متصل نمیشوند اما پیام ایجاد شده از اتصال آنتیژن به BCR را افزایش میدهند. پروتئینهای سازگاری بافتی ویژه (MHCII) گروه دیگر پروتئینهای غشای لنفوسیت B هستند. این پروتئینها با ارائه آنتیژن به فعال شدن لنفوسیتهای T کمککننده نقش دارند. به علاوه بعضی از پروتئینهای غشای لنفوسیت B فعال ازجمله پروتئینهای B7 و CD40 به تحریک سلول و ترشح آنتیبادی کمک میکنند. این پروتئینها به لیگاند غشای سلولهای T فعال متصل میشود. گیرندههای سیتوکین، گروه دیگری از پروتئینهای غشای لنفوسیت B است. این گیرندهها در پاسخ اینترلوکین و اینترفرونِ لنفوسیتهای T، کلاس آنتیبادیها را تغییر میدهند.
مراحل تکامل لنفوسیت B

در مرحله بعدی بلوغ لنفوسیتهای B، زنجیره سبک کنار زنجیره سنگین قرار میگیرد و ایمونوگلوبولین M مونومری را تشکیل میدهد. ایمونوگلوبولین M در غشا کنار دیمر ایمونوگلوبین آلفا/بتا قرار میگیرد و گیرنده اصلی سلول B تشکیل میشود. به سلولهای این رده لنفوسیتهای B نابالغ گفته میشود و گلیکوپروتئین CD20 غشا این سلولها را از سایر سلولهای B متمایز میکند. در مرحله بعدی لنفوسیتهای B نابالغ وارد فرایند انتخاب منفی میشوند.
سلولهایی که پس از انتخاب منفی زنده میمانند، لنفوسیتهای انتقالی نام دارند. بیان ژن ایمونوگلوبولین D در این سلولها شروع میشود. سلولهای انتقالی، اولین رده سلولهای B هستند که به فاکتور BAFF پاسخ میدهند. BAFF فاکتور لنفوسیت B و از خانواده فاکتورهای نکروز تومور است که از مونوسیتها، سلولهای دندریتی و سلولهای استرومای مغز استخوان ترشح میشود و سیگنال بقای سلولهای B است.
سلولهای B بالغ یا اولیه رده بعدی سلولهای B هستند. در غشای این سلولها ایمونوگلوبولین D بیشتری نسبت به سلولهای B انتقالی وجود دارد. بخشی از این سلولها در فولیکولهای اولیه و ثانویه گرههای لنفاوی و بخشی از آنها در ناحیه حاشیهای طحال مستقر میشوند. این سلولها پس از برهمکنش با آنتیژن به سلولهای B خاطره و پلاسموسیتها تمایز مییابد.
انتخاب منفی سلول های B چیست؟
نوترکیبی ژنتیکی ممکن است منجر به تشکیل گیرندههایی شود که آنتیژنهای سطح سلولهای خودی را شناسایی و پاسخ ایمنی ایجاد میکنند. به همین دلیل گیرنده سلولهای B نابالغ پیش از خروج از مغز استخوان، بهوسیله انتخاب منفی بررسی میشود. در این فرایند سلولهای B با آنتیژنهای سطحی سلولهای استرومای مغز استخوان برهمکنش میدهند. لنفوسیتهای B نابالغی که به آنتیژن غشای این سلولهای متصل شود بهوسیله آپوپتوز از بین میرود و لننفوسیتهایی که نسبت به این آنتیژنها خنثی هستند، مغز استخوان را پس از ۲۴ ساعت به مقصد اندامهای لنفاوی ثانویه ترک میکنند.
انواع لنفوسیت B
لنفوسیتهای B را بر اساس طول عمر، عملکرد و محل استقرار به انواع پلاسمابلاست، پلاسموسیت، سلولهای B خاطره، سلولهای B1، سلول B2 و سلولهای B تنظیمی تقسیم میکنند.
- پلاسمابلاست: پلاسمابلاستها سلولهای B تمایزیافته با طول عمر کوتاه هستند که تکثیر میشوند و آنتیبادی ترشح میکنند. اما تمایل آنتیبادی آنها به آنتیژن کمتر از پلاسموسیتها است. این سلولها با فعال شدن مستقل از لنفوسیتهای T و معمولا در مراحل اولیه آلوده شدن بدن تولید میشوند.
- پلاسموسیت: پلاسموسیتها سلولهایی با طول عمر زیاد هستند که آنتیبادی ترشح میکنند اما تکثیر نمیشوند. این سلولها دیرتر از پلاسموسیتها و با کمک لنفوسیتهای T تولید میشود. تمایل آنتیبادیهای این سلولها به آنتیژن بیشتر است. گیرندههای شناسایی آنتیژن در غشای این سلولها وجود ندارد. CD27 غشا این سلولها را سایر سلولهای B متمایز میکند.
- سلولهای B1: این سلولها بیشتر در حفره شکمی و حفره قفسه سینه قرار دارند. CD5 پروتئین اختصاصی غشای این سلولها است که در سایر سلولهای B وجود ندارد. این سلولها مستقل از لنفوسیتهای T فعال میشوند و به دفاع اولیه در برابر باکتریهای خون کمک میکنند.
- سلول B2: این سلولها در فولیکولهای گره لنفاوی و ناحیه حاشیهای طحال قرار دارند. بیشتر سلولهای فولیکولار در تولید پلاسموسیتها نقش دارند. ناحیه حاشیه طحال مقدار زیادی خون دریافت میکند. سلولهای B2 این ناحیه از اولین گلبولهای سفیدی هستند که با پاتوژنهای خون برخورد میکنند. این سلولها با دو روش مستقل و وابسته به لنفوسیتهای T فعال میشوند. اما فعال شدن بیشتر آنها مستقل از لنفوسیتهای T است.
- سلولهای B تنظیمی: سلولهای B تنظیمی با ترشح IL-10، IL-35 و فعال شدن لنفوسیتهای B را مهار و لنفوسیتهای T تنظیمی را فعال میکنند.
لنفوسیت B خاطره چیست؟
فعال شدن لنفوسیت B
در بخشهای قبلی این مطلب از مجله فرادرس اشاره کردیم که لنفوسیتهای B با کمک لنفوسیتهای T و مستقل از این گلبولهای سفید فعال میشوند. سلولهای B بالغ در پاسخ به آنتیژنهای غیر پروتئینی (پلیساکاریدها یا لیپوپلیساکاریدها) متصل به غشای پاتوژن، مستقل از لنفوسیتهای T فعال میشوند. اتصال چند BCR به توالیهای تکراری آنتیژنها اولین پیام فعال شدن لنفوسیت B است. پیام دوم فعال شدن سلولها از اتصال کمکگیرندهها به پروتئینهای سیستم کمپلمان یا گیرندههای تول لایک ایجاد میشود.
در ناحیه سیتوپلاسمی ایمونوگلوبولینهای آلفا و بتا توالی آمینواسیدی به نام موتیف فعال شدن گیرنده ایمنی تیروزینی (Immunoreceptor Tyrosine-based Activation Motif| ITAMs) قرار دارد. در این مسیر اتصال آنتیژن به گیرنده با فسفوریله شدن موتیف ITAM بهوسیله کینازهای Fyn و Lyn همراه است. فسفوریله شدن این موتیف کینازهای بیشتر و این کینازها پروتئینهای اتصالی به سلول بی (BLNK) را فعال میکنند. این پروتئینها فعالیت آنزیمی ندارند اما جایگاه اتصال به تعداد زیادی از پروتئینهای انتقال پیام در ساختار آنها وجود دارد. فسفولیپاز C یکی از پروتئینهای مهمی است که به BLNK متصل میشود. این آنزیم لیپیدهای فسفاتیدیل اینوزیتول بیس فسفات غشای لنفوسیت را به اینوزیتول تریفسفات (IP3) و دیآسیل گلیسرول (DAG) تجزیه میکند.

لنفوسیتهای B بالغ برای پاسخ به آنتیژنهای پروتئینی محلول در خون و لنف یا پروتئینهای غشای پاتوژنها به لنفوسیتهای T کمککننده نیاز دارند. در این مسیر اتصال آنتیژن محلول به BCR با اندوسیتوز آنتیژن همراه است. آنتیژنهای سطحی قبل از ورود به سلول از غشای پاتوژن جدا میشوند. آنتیژن پس از پردازش و اتصال به مولکولهای MHCII به سطح سلولهای B بر میگردد.
گیرنده T مخصوص این آنتیژن در غشای سلولهای T کمککننده، آنتیژن را شناسایی میکند و CD4 غشای Th2 به مولکول MHCII متصل میشود. این برهمکنش سنتز و ترشح سیتوکینها در Th2 را تحریک میکند. سیتوکینها به گیرندههای کمکی لنفوسیت B متصل میشود و واکنشهای فسفوریلاسیونهای سیتوپلاسم، بیان ژن پروتئینهای میتوز و سنتز آنتیبادیها را افزایش میدهد. در نتیجه کلونی از سلولهای B فعال تشکیل میشود که بخش زیادی از آنها به پلاستوسیتها و بخش کمی از آنها به سلولهای B خاطره تمایز مییابد. پس از ترشح ایمونوگلوبولینهای M اتصال سیتوکینها به گیرنده غشای لنفوسیت B، تغییر کلاس ژنهای آنتیبادی را فعال میکند. در تغییر کلاس بخش شناساییکننده آنتیژن ثابت است و ناحیه اتصالی به مولکولهای زیستی (دومین ثابت) آنتیبادی تغییر میکند. برای مثال در این حالت آنتیبادیهای G و A تولید شده به یک نوع آنتیژن متصل میشود.

نقش آنتی بادی
در بخش اول این مطلب توضیح دادیم که آنتیبادیها بر اساس ناحیه ثابت زنجیره سنگین به انواع IgG، IgM، IgA، IgE و IgD تقسیم میشوند. ساختار اصلی این آنتیبادیها یکسان است اما بعضی از آنها در حالت مونومری و بعضی از آنها در حالت اولیگومری فعال هستند. آنتیبادیهای G، D و E ساختار مونومری، آنتیبادیهای A ساختار دیمری و آنتیبادیهای M ساختار پنتامری دارند. زیرواحدهای آنتیبادی A و M بهوسیله پیوندهای دیسولفیدی و زنجیره پلیپپتیدی J به هم متصل میشوند.


به علاوه هر یک از این آنتیبادیها عملکرد متفاوتی دارد. این پروتئینها با آگلوتیناسیون، اوپسونیزاسیون، خنثی کردن توکسین، فعال کردن سیستم کمپلمان و خنثی کردن ویروس به سیستم ایمنی کمک میکنند. به علاوه آنتیبادی G با عبور از جفت و آنتیبادی A همراه شیر مادر به بدن نوزاد انتقال پیدا میکند. این دو آنتیبادی نقش مهمی در شکلگیری سیستم ایمنی اولیه جنین و نوزاد دارند.
- در آگلوتیناسیون، آنتیبادیها به آنتیژن آزاد یا آنتیژن سطحی میکروبها متصل میشود. این اتصال با تشکیل تودههای باکتری یا رسوب آنتیژنهای آزاد همراه است. ایمونوگلوبولینهای G و M در آگلوتیناسیون شرکت میکنند.
- اوپسونیزاسیون فرایندی است که با برهمکنش مکانیسمهای دفاع اختصاصی و ذاتی ایجاد میشود. در این فرایند فاگوسیتها (ماکروفاژ، نوتروفیل و سلولهای دندریتی) ناحیه ثابت آنتیبادیهای متصل به آنتیژن سطحی را شناسایی و فاگوسیتوز میکنند.
- گیرنده ناحیه ثابت آنتیبادیها علاوه بر فاگوسیتها در غشای سلولهای کشنده طبیعی وجود دارد. این سلولها آنتیبادی متصل به میکروب یا سلولهای توموری را شناسایی و با آزاد کردن وزیکولهای سیتوپلاسمی سلول را از بین میبرند. آنتیبادی G به آنتیژنهای توموری متصل میشود.
- سیستم کمپلمان به مجموعهای از پروتئینهای پلاسما گفته میشود که با افزایش فاگوسیتوز یا لیز کردن میکروبها به سیستم ایمنی کمک میکنند. در مسیر کلاسیک این سیستم، اولین پروتئین مکمل به آنتیبادی-آنتیژن سطحی متصل میشود. اتصال پروتئینهای بعدی با تشکیل کانالهای پروتئینی در غشای میکروب و لیز شدن سلول همراه است. ایمونوگلوبولین M و G به پروتئینهای این سیستم متصل میشوند.
- اتصال ایمونوگلوبولین G به توکسین باکتریها، اثر توکسین بر بافتها را مهار میکند.
- اتصال آنتیبادی به پروتئینهای اتصال به میزبان پوشش ویروس یا پروتئینهای لازم برای رهایش DNA یا RNA، ویروسها را خنثی میکند. آنتیبادیهای G و A با اتصال به ویروسها به سیستم ایمنی کمک میکنند.
تفاوت لنفوسیت B و لنفوسیت T چیست؟
تفاوت گیرنده سلول B و لنفوسیت T
یکی از تفاوتهای لنفوسیت B و T در این است که لنفوسیتهای T فقط آنتیژنهای متصل به گیرنده سلولهای ارائهدهنده آنتیژن (ماکروفاژ، سلولهای دندریتی و سلولهای B) را شناسایی میکنند. گیرنده آنتیژنی لنفوسیت تی (TCR) شباهت زیادی به گیرنده آنتیژنی لنفوسیت B دارد. به علاوه پروتئینهای CD غشای این سلولها نشانههای تمایزی انواع سلولهای T است و در اتصال به سلولهای ارائهدهنده آنتیژن نقش دارد.
گیرنده بیشتر سلولهای T برخلاف گیرنده لنفوسیت B از دو زنجیره پپلیپپتیدی آلفا و بتا، و در تعداد کمی از این سلولها از زنجیره گاما و دلتا تشکیل شده است که با پیوند دیسولفیدی به هم متصل میشود. این گلیکوپروتئینها از دومینهای ثابت و متغیر، و بخش کوچک درونغشایی تشکیل شده است. این گیرندهها برخلاف گیرندههای لنفوسیت B آنتیژنهای پپتیدی کوچک را شناسایی میکنند و تنها یک جایگاه اتصال به آنتیژن دارند. به علاوه ناحیه لولا در ساختار زنجیره سنگین گیرندههای لنفوسیت B انعطافپذیری این پروتئینها نسبت به گیرندههای لنفوسیت T را افزایش میدهد. گیرندههای لنفوسیت B در غشا و پس از ترشح به آنتیژنها متصل میشوند. اما شکل ترشحی گیرندههای لنفوسیت T وجود ندارد.
جهشهای ژنتیکی دومینهای ثابت و متغیر گیرندههای لنفوسیت B تمایل این پروتئینها به آنتیژن و کلاس آنتیبادیها را در طول پاسخ ایمنی تغییر میدهد. اما دومینهای ثابت و متغیر گیرندههای لنفوسیت T پس از اتصال به آنتیژن تغییر نمیکند. در ژن زنجیره آلفا و بتای گیرندههای لنفوسیت T مثل زنجیره سبک گیرنده لنفوسیت B دو جایگاه J و V وجود دارد. اما ژن زنجیرههای گاما و دلتا از سه جایگاه J، V و D تشکیل شده است.

در غشای لنفوسیت T مثل لنفوسیت B پروتئینهای کمکگیرنده وجود دارد که تحریک آنها پاسخ ایمنی را افزایش میدهد. CD4 و CD8 کمکگیرنده انواع لنفوسیت T است. CD4 از یک و CD8 از دو زنجیره گلیکوپروتئینی تشکیل شده است. CD4 به MHCII و CD8 به MHCI متصل میشود. لنفوسیتهای T بالغ مثل لنفوسیتهای B بالغ برای فعال شدن به دو سیگنال نیاز دارند. سیگنال اول از برهمکنش آنتیژن-MHC با TCR و سیگنال دوم از برهمکنش پروتئینهای کمک محرک با پروتئینهای غشای سلولهای ارائهدهنده آنتیژن ایجاد میشود. CD28 یک از پروتئینهای کمک محرک لنفوسیت T است که با پروتئینهای خانواده B7 در غشای سلولهای ارائهدهنده آنتیژن برهمکنش میدهد. این برهم کنش ترشح IL-2 (فاکتور رشد لنفوسیت T) را تحریک میکند. CD40 کمک محرک دیگر غشای لنفوسیت T است که با پروتئینهای CD40 غشای ماکروفاژها، سلولهای دندریتی و سلولهای B برهمکنش میدهد.

تفاوت تکامل سلول B و لنفوسیت T
در مرحله اول تکامل تیموسی با بیان آنزیمهای ریکامبیناز و دئوکسی ریبونوکلئوتیدیل ترانسفراز بازآرایی ژنتیکی زنجیرههای گاما، دلتا و بتای TCR شروع میشود. ژن زنجیره بتا در سلولهای با بازآرایی بهتر ژن دلتا و گاما، خاموش میشود. این لنفوسیتها از تیموس خارج شده و در بافت اپیتلیال محیطی بدن مستقر میشوند. در سلولهایی که بازآرایی ژن بتا بهتر است، پروتئینهای CD3، زتا و پیشزنجیره آلفا بیان میشود. در مرحله دوم تکامل بیان ژنهای پیشزنجیره آلفا کاهش یافته و با افزایش بیان آنزیم ریکامبیناز، بازآرایی ژن زنجیره آلفا شروع میشود. به علاوه کمکگیرندههای CD8 و CD4 در این مرحله بیان میشوند.

پس از جدا شدن لنفوسیتهای CD4 و CD8 در انتخاب مثبت و منفی بازآرایی زنجیرههای پلیپپتدی آلفا پایان مییابد و لنفوسیتهای T بالغ از تیموس خارج میشود. این سلولها بر اساس گیرندههای کموکین و پروتئینهای اتصالی به سلولهای دیگر در بخشهای مختلف سیستم لنفاوی بدن مستقر میشوند. این سلولها پس از اتصال به آنتیژن کلونی تشکیل میدهند که به سلولهای عملکننده و خاطره تمایز مییابد. سلولهای T خاطره مثل سلولهای B خاطره در برخورد مجدد با آنتیژن سریعتر پاسخ ایمنی ایجاد میکنند.
انتخاب مثبت و منفی لنفوسیت های T
انتخاب مثبت و منفی دو فرایند مجزا است که سلولهای T را براساس کمکگیرندهها جدا میکند. در پایان این فرایند در بعضی از سلولهای T پروتئین CD4 و در بعضی از این سلولها CD8 بیان میشود. در مرحله اول (انتخاب مثبت) سلولهایی که دو پروتئین CD4 و CD8 را دارند با مولکولهای MHCI و MHCII سلولهای اپیتلیال قشر تیموس برهمکنش میدهند. به MHC این سلولها آنتیژنهای پپتیدی سلولهای خودی بدن متصل است. سلولهای T که با یکی از مولکولهای MHC با تمایل بیشتری برهمکنش میدهد، زنده باقی میماند. بیان CD4 در سلولهایی که MHCI پاسخ میدهند، کاهش و بیان CD8 در این سلولها افزایش میدهد. به طور متقابل، بیان CD8 در سلولهایی که به MHCII پاسخ میدهند، کاهش و بیان CD4 در این سلولها افزایش مییابد.
تفاوت عملکرد لنفوسیت T و سلول B
اگر در بخشهای قبلی این مطلب با ما همراهی کرده باشید، متوجه شدید که لنفوسیتهای T مثل لنفوسیتهای B به دو سیگنال برای فعال شدن نیاز دارند. در نبود سیگنال دوم، سیگنال اول منجر به غیرفعال شدن لنفوسیت T میشود. به علاوه متوجه شدیم که لنفوسیتهای T به آنتیژن متصل به MHC سلولهای ارائدهدهنده آنتیژن واکنش میدهند. سلول های دندریتی انواعی از گلبولهای سفید است که از تمایز سلولهای بنیادی میلوئیدی در مغز استخوان تولید میشود و سلولهای ارائهدهنده آنتیژن اصلی در فعال شدن لنفوسیتهای است. سلولهای دندریتی به دو گروه اصلی پلاسماسیتوئید و میلوئید تقسیم میشوند. سلول دندریتی پلاسماسیتوئید با ترشح اینترفرون آلفا و بتا به مراحل اولیه پاسخ ذاتی بدن و سلول دندریتی میلوئید با فعال کردن لنفوسیتهای T به دفاع اکتسابی کمک میکنند.

در غشای سلولهای دندریتی نابالغ گیرندههای شناساییکننده الگو، گیرنده فاگوسیتوز و تعداد کمی مولکول MHC وجود دارد. بعد از اتصال آنتیژن به گیرندههای فاگوسیتوز، پاتوزن وارد سیتوپلاسم سلول شده و در فاگولیزوزوم آنتیژن آن جدا میشود. آنتیژن پس از پردازش به مولکولهای MHC II متصل و به غشای پلاسمایی منتقل میشود. این سلولها پس از فعال شدن از بافت آلوده به گرههای لنفاوی منتقل میشود و آنتیژن را در اختیار لنفوسیتهای T کمککننده (Th) قرار میدهد. برهمکنش آنتیژن با TCR، کمکگیرنده CD4 با MHC و پروتئینهای کمک محرک در غشای لنفوسیت T با سلولهای دندریتی، تیروزین کینازهای Fyn و Lck را فعال میکند. این کینازها مسیر انتقال پیام سلولی مشابه لنفوسیتهای B را فعال میکنند. در این مسیر فسفولیپاز C فعال شده و اینوزیتول بیش فسفات غشا را به IP3 و DAG تجزیه میکند. این مولکولها با افزایش غلظت کلسیم سیتوپلاسم و فعال کردن فاکتورهای رونویسی بیان ژنها را تغییر میدهند.
بخش اصلی ژنهای فعال شده مربوط به سیتوکینها است. این سیتوکینها فعالیت سلولهای Tدیگر، سلولهای B، سلولهای مغز استخوان و گلبولهای سفید ایمنی ذاتی را تغییر میدهد. IL2 یکی از ژنهایی است که در لنفوسیتهای T فعال بیان میشود. این سیتوکین فاکتور رشد لنفوسیتهای T است و به گیرندههای سلولی که از آن ترشح شده و سلولهای کلون تازه تشکیل شده متصل میشود. در پایان این مرحله سلولهای T به سلولهای عملکننده و خاطره تمایز مییابد. بیان پروتئینهای اتصالی در سلولهای T عملکننده تغییر میکند. در نتیجه این سلولها از گرههای لنفاوی خارج شده و به بافت آلوده مهاجرت میکنند. Th خروجی از گرههای لنفاوی یکی از سلولهای Th1، Th2 یا Th17 است.
- سلولهای Th1: از اتصال IL-12 به گیرندههای سیتوکین لنفوسیت T بالغ سلولهای Th1 تشکیل میشود. IL-12 در مراحل اولیه آلودگی داخلی سلولی با باکتری و ویروس از سلولهای دندریتی و سلولهای کشنده طبیعی ترشح میشود. سلولهای Th1 با ترشح اینترفرون گاما و IL2 ماکروفاژها، لنفوسیتهای T کشنده و سلولهای کشنده طبیعی را فعال میکنند. اینترفرون گاما با اتصال به گیرندههای سلول B کلاس آنتیبادیها را تغییر میدهد.
- سلولهای Th2: این سلولها از تمایز لنفوسیتهای T بالغ، پس از اتصال IL-4 به گیرنده در پاسخ به آلودگی انگلی تولید میشود. این سیتوکین از ماستسلها، سلولهای T کمککننده فعال و سلولهای کشنده طبیعی ترشح میشود. فعال شدن این سلولها با ترشح IL-4، IL-5 و IL-13 همراه است. اتصال IL-4 و IL-13 به گیرندههای سیتوکین سلولهای B سبب تغییر کلاس آنتیبادیها از E به G میشود و IL-5 ائوزینوفیلها را فعال میکند.
- سلولهای Th17: سلولهای Th17 از اثر همزمان IL21، IL6 و «فاکتور رونویسی دگرگونی بتا» () بر لنفوسیت T بالغ تولید میشود. این سلولها با ترشح IL-17، IL-21 و IL-22 به سیستم ایمنی کمک میکنند. IL-17 و IL-22 فاکتورهای پیشالتهابی هستند. به علاوه IL-17 بسیاری از گلبولهای سفید ایمنی ذاتی بدن را فعال میکند. این سلولها به ایجاد پاسخ ایمنی در برابر باکتریهای خارج سلولی و قارچها کمک میکنند.

جمعبندی
در این مطلب از مجله فرادرس توضیح دادیم که لنفوسیت B یکی از گلبولهای سفید سیستم ایمنی است که مثل سایر سلولهای خونی از تمایز سلولهای بنیادی مغز استخوان تولید میشود. این سلولها و لنفوسیتهای T تنها گلبولهای سفیدی هستند که آنتیژنها را به طور اختصاصی شناسایی میکنند. لنفوسیتهای B بیشتر آنتیژنهای غیرپروتئینی موجود در مایعات بدن و لنفوسیتهای T آنتیژنهای پروتئینی سلولهای آلوده به ویروس و تومورها را شناسایی میکنند. گیرنده آنتیژنی سلولهای B آنتیبادی M است که از چهار زنجیره پلیپپتیدی تشکیل شده و دو مکانیسم وابسته و مستقل از لنفوسیتهای T فعال میشود. اتصال این گیرنده به آنتیژنها با فعال شدن سلول و ترشح آنتیبادیهای M پنتامر، E، A، D و G همراه است. آنتیبادیها به آنتیژن غشایی پاتوژنها، آنتیژن محلول در خون یا لنف و توکسین باکتریها متصل میشود. اتصال آنتیبادی به آنتیژنهای سطحی از ورود پاتوژن به سلولهای سالم جلوگیری میکند و احتمال فاگوسیتوز شدن پاتوژن را افزایش میدهد. بعضی پروتئینهای سیستم کمپلمان آنتیبادی متصل به آنتیزن را شناسایی میکنند و پاتوژن را از بین میبرند. در نتیجه تکثیر و رشد پاتوژن در بدن متوقف میشود.
مطالب مجله فرادرس را در جستجوی گوگل سریعتر ببینید
سلام بالای تصویر توضیح MHC کلاس ها MHCیک و دو رو توی متن جا به جا نوشتین.
خیلی ممنون از مطلب مفیدتون
با سلام و وقت بخیر.
مطلب بازبینی و اصلاح شد.
از توجه، دقت و همراهی شما با مجله فرادرس سپاسگزاریم.