متیلاسیون DNA چیست؟ – در اپی ژنتیک و به زبان ساده
- یاد میگیرید تفاوت تغییرات ژنتیکی و اپیژنتیکی چیست.
- یاد میگیرید متیلاسیون DNA چگونه ژنها را تنظیم میکند.
- میآموزید چگونه آنزیمها و پروتئینها الگوهای متیلاسیون را کنترل میکنند.
- خواهید توانست تأثیر متیلاسیون روی بیان ژن و سرطان را توضیح دهید.
- نقش متیلاسیون در پروکاریوتها و سیستم دفاعی آنها را خواهید شناخت.
- میآموزید غیرفعال شدن کروموزوم X چه پیامدهایی دارد.
مطالب مجله فرادرس را در جستجوی گوگل سریعتر ببینید


متیلاسیون DNA چیست؟
مکانیسم متیلاسیون DNA
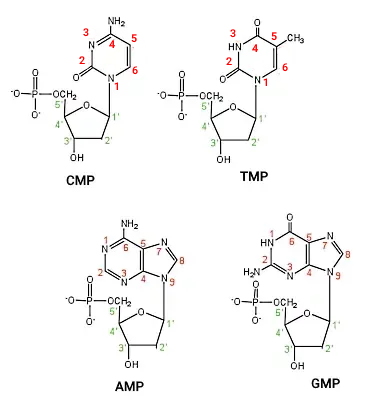
DNA از دو رشته نوکلئوتیدی تشکیل شده که ساختاری مارپیچی (هلیکس) دارند. هر نوکلئوتید DNA از یک باز پورین یا پیریمیدین، قند دئوکسی ریبوز و سه گروه فسفات تشکیل و بر اساس نوع بازها به انواع آدنوزین تریفسفات (ATP)، سیتوزین تریفسفات (CTP)، گوآنوزین تریفسفات (GTP) و تیمیدین تریفسفات (TTP) تقسیم میشود. گوانین و آدنین بازهای پورین هستند که از دو حلقه و سیتوزین و تیمین بازهای پیریمیدین هستند که از یک حلقه نیتروژنی تشکیل میشوند.

نقش متیلاسیون در تنظیم بیان ژن
پروتئینهای دارای دومینهای MBD، UHRF و انگشت روی به با اتصال به ۵-متیل سیتوزین به تنظیم بیان ژن و متیلاسیون کمک میکند. در پروتئینهای MBD یک دومین اتصالی به متیل CpG و یک دومین مهار رونویسی (TRD) وجود دارد. به جز MBD3 و MBD4 سایر پروتئینهای این خانواده به DNA متصل میشوند. MBD3 به دلیل جهش در دومین اتصالی به متیل سیتوزین، به طور مستقیم به DNA متصل نمیشود و MBD4 در حضور پروتئینهای ترمیم باز تیمین، یوراسیل یا ۵-فلورویوراسیل به DNA متصل میشود. Kaiso به دو ۵-متیل سیتوزین متوالی متصل شده و مهار ژن با متیلاسیون را تحریک میکند.
پروتئینهای UHRF، پروتئینهای شبیه یوبیکوئیتین با دومینهای PHD و انگشت حلقه (Ubiquitin-like, Containing PHD and RING Finger domain | UHRF) هستند. این پروتئینها Dnmt1 را به DNA (به ویژه در همانندسازی) متصل و به حفظ الگوی متیلاسیون کمک میکند. Kaiso، ZBTB4، و ZBTB38 پروتئینهایی هستند که با موتیف انگشت روی به DNA متصل میشود. ZBTB4 و ZBTB38 به دو جایگاه CpG پشت سر هم متصل میشوند و تمایل آنها به توالیهای غیرمتیله بیشتر است.
متیلاسیون DNA و هیستون
Dnmts1 و Dnmts3a به آنزیم هیستون متیل ترانسفراز (SUV39H1) و هیستون استیلاز متصل میشوند. آنزیمهای هیستون متیل ترانسفراز (HMTs) با اضافه کردن متیل به آمینواسیدهای انتهای آمینی هیستون بیان ژن را مهار میکنند. آنزیمهای داستیلاز (HDACs) با جدا کردن گروههای استیل از هیستونها، برهم کنش DNA-هیستون و فشردگی DNA را افزایش میدهند. تغییرات هیستون الگوی متیلاسیون DNA را نیز تغییر میدهد.

Dnmt3L پس از اتصال به H3 آنزیمهای Dnmt3a و Dnmt3b را به نوکلئوزوم فرا میخواند. اضافه شدن سه گروه متیل به چهارمین لیزین انتهای آمینی (H3K4) این هیستون، اتصال متیل ترانسفرازها و متیلاسیون DNA را مهار میکند. افزایش استیلاسیون هیستونها، دمتیلاسیون DNA را را افزایش می دهد. برهمکنش پروتئینهای MBD و UHRF با هیستونها و DNA به مهار بیان ژن کمک میکند. MeCP2 هیستون داستیلاز و هیستون متیل ترانسفراز را به ژن فرامیخواند جدا شدن گروههای استیل و اضافه شدن گروههای متیل به نهمین لیزین انتهای آمینی هیستون ۳ (H3K9) بیان ژن را مهار میکند.
متیلاسیون DNA پروکاریوت
- تنظیم بیان ژن: متیلاسیون آدنوزین با کاهش پایداری ترمودینامیکی، ساختار سهبعدی DNA و اتصال آن به پروتئینها را تغییر میدهد. تغییر اتصال DNA-پروتئین بیان ژنها را تغییر میدهد. «تنوع فاز» (Phase Variation) مکانیسمی است که در پاسخ به تغییرات محیطی و بدون ایجاد جهش، به ایجاد تنوع ژنتیکی باکتری کمک میکند. ژنهای کدکننده مولکولهای ادهسین، پیلی، گیرندههای آهن، لیپوپلیساکاریدها و متیل ترانسفرازها بهوسیله این مکانیسم تنظیم میشود. متیلاسیون توالیهای تنظیمی ژن ها اتصال RNA پلیمراز به DNA را مهار و فاصله زمانی بین حالت فعال و غیرفعال ژن را تغییر میدهد.
- سیستم دفاعی: سیستم دفاعی باکتریها از آنزیمهای متیل ترانسفرازها و آنزیمهای محدودکننده تشکیل شده است. متیلترانسفراز الگوی متیلاسیون DNA را حفظ و آنزیمهای محدودکننده DNA خارجی فاقد این الگو را شناسایی میکنند. آنزیمهای محدودکننده DNA غیرمتیله باکتریوفاژ را برش میدهند و آنزیمهای متیل ترانسفراز گروههای متیل را به توالی شناسایی آنزیم محدودکننده روی DNA باکتری اضافه میکنند. سیستم دفاعی باکتریها بر اساس ساختار زیرواحدها، جایگاه برش، توالی شناسایی DNA و فاکتورهای کمکی آنزیمها به چهار گروه تقسیم میشوند.
- سیستم نوع I از دو زیرواحد متیل تراسفراز، رو زیرواحد آنزیم محدودکننده و یک جایگاه اتصال به DNA تشکیل شده است. آنزیم محدودکننده این سیستم DNA دورشتهای را در فاصله زیادی از جایگاه شناسایی برش میدهد و متیل ترانسفراز گروههای متیل را به دو رشته DNA اضافه میکند.
- سیستم نوع II از دو پروتئین Mod (متیل ترانسفراز) و Res (آنزیم محدودکننده) تشکیل شده است که جایگاه شناسایی DNA مستقل از هم دارند.
- سیستم نوع III کمپلکسی از دو پروتئین Mod و یک پروتئین Res است. Mod گروههای متیل را به یکی از رشتههای DNA در توالیهای غیر پالیندرومیک اضافه میکند و کمپلکس Res1Mod2 مولکول DNA را در فاصله ۲۰ تا ۳۰ جفتبازی برش میدهد.
دمتیلاسیون DNA
- دآمیناسیون متیل سیتوزین را بهوسیله کمپلکس سیتوزین دآمیناز القاشده و کمپلکس آنزیم ویرایش mRNA آپوپروتئین بی (AID/APOBEC)، به تیمین تبدیل میکند. پروتئینهای مسیر BER ناجور باز G-T را شناسایی و نوکلئوتید T را با C جایگزین میکنند.
- آنزیمهای ترانسلوکاز ده-یازده (Tet1، Tet2 و Tet3) یک گروه هیدروکسیل به ۵-متیل سیتوزین اضافه میکند. دو مسیر برای تغییر ۵-متیل هیدروکسیل سیتوزین در پستانداران وجود دارد. در یکی از این مسیرها متیل هیدروکسیل سیتوزین با چند مرحله اکسیداسیون اول به ۵-فرمیل سیتوزین و سپی به ۵-کربوکسی سیتوزین تبدیل میشود. در مسیر دیگر ۵-متیل هیدروکسیل بهوسیله کمپلکس آنزیمی AID/APOBEC به ۵-هیدروکسی متیل یوراسیل تبدیل میشود.

نقش متیلاسیون DNA در سرطان
هیپومتیلاسیون ژن در تومورهای پیشرفته و متاستاتیک بیشتر از تومورهای اولیه است. در این فرایند متیلاسیون توالیهای درون ژنی و بین ژنی کاهش مییابد. تعداد توالیهای تکراری و تراسپوزونها در این مناطق بیشتر است که متیلاسیون رونویسی آنها را مهار کرده است. هیپومتیلاسیون این بخش از ژنها منجر به رونویسی mRNAهای غیرطبیعی میشود. L1NE1 (عنصر بلند پراکنده هستهای ۱) یکی از تراسپوزنهایی است که در بیشتر جهشهای ژنوم انسان نقش دارد و با متیلاسیون مهار میشود. هیپومتیلاسیون پروموتر این ژن، پروموتر جایگزین ژن گیرنده فاکتور رشد هپاتوسیتها (MET) را فعال میکند. افزایش بیان ژن MET اندازه رشد تومور، رگزایی و متاستاز را افزایش میدهد.
آنالیز متیلاسیون DNA
غیر فعال شدن کروموزوم X

RNA رونویسی شده از دو ژن XIST و TSIX در کروموزومهای X غیرفعال شدن کروموزوم را تنظیم میکند. این ژنها فقط در سلولهایی بیان میشوند که حداقل دو کروموزوم X وجود دارد. XIST (رونوشت مخصوص کروموزم x غیرفعال | X-Inactive Specific Transcript) یکی از lncRNAها است که با اتصال به رشته DNA که از آن رونویسی شده، بیان ژنها را غیرفعال میکند. اتصال RNA-DNA در این فرایند با جدا شدن گروههای عاملی جداکننده هیستون از DNA، اضافه شدن گروههای فشردهکننده هیستون-DNA، متیلاسیون سیتوزینها و فراخوانی پروتئینهای اتصالی به هتروکروماتین همراه است.
در این فرایند بخش کمی از ژنها (حدود ۱۵ تا ۳۰٪) غیرفعال نمیشود. بعضی از ژنها در کروموزوم X تمام سلولهای بدن فرد فعال و بعضی بر اساس نوع سلول متفاوت هستند. اختلال در فرایند غیرفعال شدن کرومووزم X و ژنهای فعال آن ممکن است به بیماریهای ژنتیکی وابسته به کروموزوم X، بیماریهای وابسته به تغییر تعداد کروموزوم و بیماریهای وابسته به بیان ژنها در دو کروموزوم X منجر شود.
سوالات متداول
در این بخش از مطلب مجله فرادرس تعدادی از سوالات متداول پیرامون دمتیلاسیون DNA و تغییرات اپیژنتیکی را توضیح میدهیم.
نقش تغییرات اپی ژنتیک در بیماری های خودایمنی چیست؟
عملکرد طبیعی سیستم ایمنی بدن به توانایی فعال شدن در برابر آنتیژنهای خارجی و غیرفعال بودن در برابر آنتیژنهای خودی است. بسیاری از فعالیتهای سلولهای ایمنی ازجمله تمایز سلولهای خونساز، بازآرایی ژن گیرندههای آنتیژنی، بیان اللها و ایجاد پاسخ ایمنی در برابر پاتوژنها بهوسیله مکانیسمهای اپیژنتیکی تنظیم میشود. تغییر این مکانیسمها در پاسخ به تغییرات محیطی احتمال ابتلا به بیماریهای خودایمنی را افزایش میدهد. اختلال در غیرفعال شدن کروموزوم X یکی از تغییرات اپیژنتیکی است که با افزایش ابتلا به بیماریهای خودایمنی همراه است. همچنین هیپومتیلاسیون ژن هیستون استیلاز ۱، هایپراستیلاسیون H3 و H4 و هیپومتیلاسیون نهمین لیزین انتهای آمینی HJ3 از تغییرات اپیژنتیکی در بافت مفصلی افراد مبتلا به روماتوئید آرتریت است.
نقش متیلاسیون DNA در درمان بیماری ها چیست؟
بررسی متیلاسیون DNA به تشخیص نوع تومورها، اثربخشی درمان، پیشبینی اثزبخشی درمان و انتخاب روش درمانی مناسب در بیماران مبتلا به سرطان کمک میکند. الگوی متیلاسیون DNA در تومورها تغییر میکند. با مهار آنزیمهای متیل تراسفراز ازجمله ۵-آزا-۲-دئوکسی سیتیدین و «دسیتابین» (Decitabine) که آنالوگهای سیتوزین هستند، میتوان از گسترش تومورها پیشگیری کرد. این ترکیبات در همانندسازی DNA شرکت میکنند. متیل تراسفرازها این ترکیبات را به جای سیتوزین شناسایی میکنند. ساختار متفاوت آنالوگهای سیتوزین اتصال محکم متیلترانسفرازها به DNA را ضعیف و سیستم ترمیم را فعال میکند. در نهایت متیل ترانسفراز بهوسیله پروتئازها تجزیه و متیلاسیون الگوهای توموری متوقف میشود.
مطالب مجله فرادرس را در جستجوی گوگل سریعتر ببینید