کنفورماسیون مولکول های زیستی – به زبان ساده
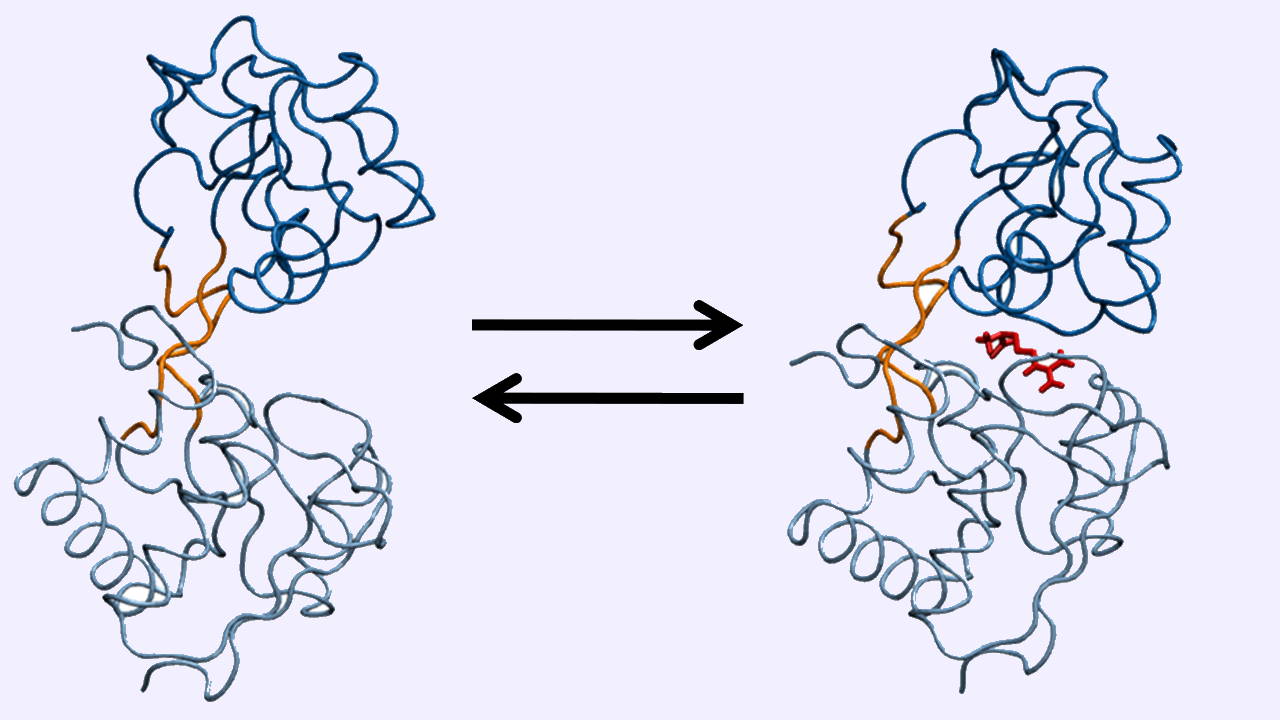


کنفورماسیون چیست ؟
تفاوت کنفورمیشن و کانفیگوریشن
ایزومرهای کنفورماسیونی
نیروهای موثر در تغییرات کنفورماسیونی
نیروهایی که به تشکیل ساختار سهبعدی مولکولهای زیستی کمک میکنند، در تغییر کنفورماسیونها نیز مشارکت دارند. در ادامه این نیروها را معرفی میکنیم.
- برهمکنشهای آبگریز: این برهمکنش بین قسمتهای ناقطبی دو مولکول یا بخشهای غیرقطبی در یک مولکول بهوجود میآيد.
- پیوندهای هیدروژنی: این پیوند از برهمکنشهای دوقطبی-دوقطبی بین دو مولکولی تشکیل میشود که در یکی از آنها، هیدروژن به اتمی با الکترونگاتیوی بالا متصل شده است. این برهمکنش نیز بین دو مولکول یا بخشهای مختلف یک ماکرومولکول بهوجود میآيد.
- نیروهای واندوالس: این برهمکنش بین دو مولکول یا بخشهای مختلف مولکولی بهوجود میآید که قطبشپذیری دارد.
کنفورماسیون پروتئین چیست ؟
کنفورماسیون پروتئین در عملکرد آن و برهمکنش این مولکول با دیگر مولکولهای آلی و معدنی نقش بسیار مهمی دارد. بر اساس تغییرات کنفورماسیونی، دو نوع برهمکنش در این مولکولها وجود دارد.
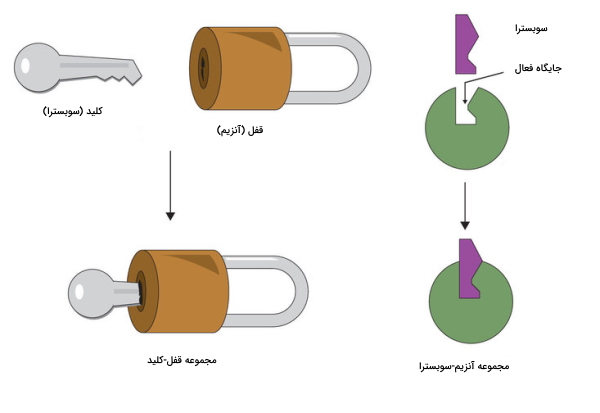
- برهمکنش «قفل و کلید» (Lock-and-Key): در این حالت پروتئین و سوبسترا، ساختاری مکمل دارند و به تغییر ساختار هیچکدام برای اتصال نیاز نیست.
- برهمکنش «جفت شدن القایی» (Induced Fit): در این حالت اتصال سوبسترا، یا عامل تنظیمی سبب ایجاد تغییر در ساختار پروتئین و جفت شدن دو مولکول میشود. این نوع برهمکنش، تنوع بیشتری دارد.
تغییر کنفورماسیون در هموگلوبین
هموگلوبین ماکرومولکولی تترامر است و از دو زیر واحد و دو زیرواحد تشکیل میشود. هر زیرواحد بخش پروتئینی «هِم» (Heme) به متصل میشود. این پروتئین دو کنفورماسیون T (بدون اکسیژن) و R (متصل به اکسیژن) دارد. اتصال به یکی از گروههای هِم تغییرات زیر را بهدنبال دارد که تمایل هِم به را افزایش میدهند.
- تغییر در الکترونگاتیوی هیستیدین موجود در جایگاه اتصال
- تغییر برهمکنش بین زیرواحدها
- تغییر کنفورماسیون T به R
تغییر کنفورماسیون در آنزیم
این آنزیمها جایگاه تنظیمی دارند که به «فعالکننده» (Activator) یا «مهارکننده» (Inhibitors) متصل میشود. تغییر کنفورماسیون فعال یا غیرفعال در آنزیم، بستگی به غلظت فعالکننده و مهارکننده دارد. فعالکنندهها فعالیت آنزیم را افزایش و مهارکنندهها آن را کاهش میدهند.
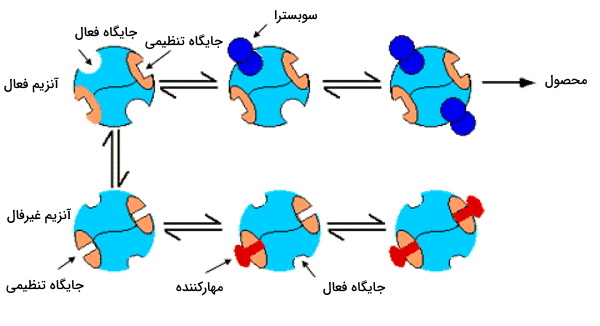
بر اساس نوع سوبسترا و عامل تنظیمکننده دو نوع تنظیم آلوستریک وجود دارد که تنها مختص آنزیمها نیست.
- «تنظیم همگرا» (Homotropic Regulation): در این نوع تنظیم، سوبسترا همان فعالکننده است. مثل اتصال اکسیژن به هموگلوبین.
- «تنظیم غیرهمگرا» (Heterotropic Regulation): در این نوع تنظیم سوبسترا و عامل تنظیم متفاوت هستند. مثل اتصال کربندیاکسید به هموگلوبین.
همچنین دو مکانسیم پیشنهادی برای تنظیم آلوستریک جایگاه فعال وجود دارد.
- «مدل پیوستگی ساده» (Simple Sequential Model): در این مکانسیم فرض بر این است که تغییر کنفورماسیون در یک زیرواحد از حالت «شل» (Relax) به حالت «فشرده» (Tensed) سبب ایجاد تغییر در زیرواحدهای دیگر میشود، یعنی در یک مقطع زمانی، یک زیرواحد در حالت R و دیگری در حالت S است. این روش «همتعاملی منفی» (Negative Cooperativity) درآنزیمها را نشان میدهد.
- «مدل موزون یا متقارن» (Concerted or Symmetry Model): در این روش تنظیمی، همه زیرواحدها، همزمان در حالت R یا T قرار دارند.
نمونههایی از آنزیم آلوستریک
آنزیمهای زیادی در تنظیم مسیرهای زیستی نقش دارند که برخی از آنها بهشکل آلوستریک تنظیم میشوند. گلوکوکیناز و استیل-کوآ کربوکسیلاز از جمله این آنزیمها هستند.
- «گلوکوکیناز» (Glucokinase): این آنزیم در هومئوستازی گلوکز نقش مهمی ایفا و گلوکز را به گلوکز ۶-فسفات تبدیل میکند. تمایل این آنزیم به گلوکز کم است و در غلظت بالای گلوکز کبدی فعالیت میکند. گلوکوکیناز برای فعالیت نیاز به پروتئینها تنظیمی دارد.
- «استیل-کوآ کربوکسیلاز» (Acetyl-CoA Carboxylase): این آنزیم فرایندهای مربوط به «سنتز لیپید» (Lipogenesis) را تنظیم میکنند. فعالکننده این آنزیم، سیترات و مهارکننده آن مولکولهای اسیل-کوآ هستند. این آنزیم با فسفوریله و دفسفوریله شدنِ تحت کنترل هورمونهای گلوکاگون و اپینفرین نیز تنظیم میشود.
تغییر کنفورماسیون گیرنده برای اتصال به لیگاند
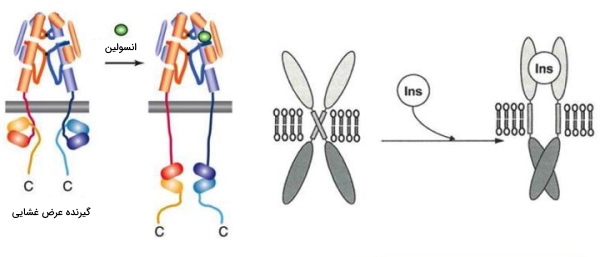
گیرندههای پروتئینی، گروهی از پروتئینهای عرض غشایی یا درونسیتوپلاسمی هستند که از بخشهای مختلفی تشکیل شدهاند و با اتصال لیگاندها از جمله هورمون، انتقالدهنده عصبی و متابولیتهای مختلف عملکرد سلول را تغییر میدهند. اتصال لیگاند به جایگاه مخصوص خود در گیرنده، تغییر کنفورماسیون گیرنده و برهمکنش بخش درونسیتوپلاسمی با مولکولهای دیگر از جمله پروتئینهای G را باعث میشود و شروع آبشاری از واکنشها را بهدنبال خواهد داشت.
تغییر کنفورماسیون کانالهای دریچهدار
کانالهای دریچهدار به ۳ دسته تقسیم میشوند
- ولتاژی
- لیگاندی
- مکانیکی
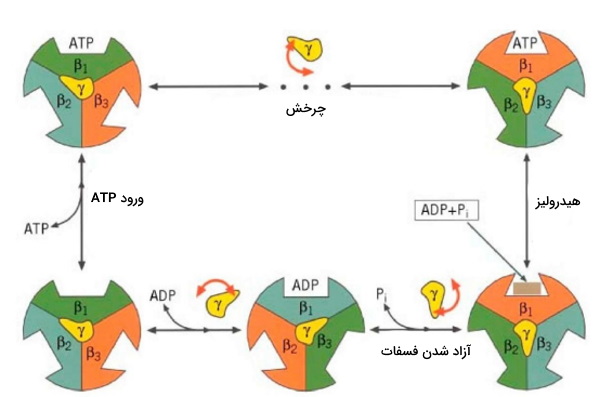
تغییر کنفورماسیون ATP سنتتاز
- «فشرده» (Tight)
- «شل» (Loose)
- «باز» (Open)
کنفورماسیون زیرواحد ، بهدنبال چرخش زیرواحد تغییر میکند. انرژی این چرخش از انتقال ، بهوسیله بخش F0 تامین میشود.
کنفورماسیونهای نوکلئیک اسید
ساختار دوم نوکلئوئیک اسیدها
توالی بازها در ساختار اول نوکلئوئیک اسیدها ، در تشکیل ساختار دوم نقش اساسی دارد. عامل اصلی ایجاد ساختار دوم، برهمکنش بینبازی، درون یک رشته یا بین دو رشته از DNA یا RNA است. این ساختارها شامل موارد زیر میشوند.
- مارپیچ دوتایی
- شاخهای
- حلقههای برآمده
- چهاروجهی
مارپیچ دوتایی
ویژگی ساختاری قند موجود در نوکلئوئیک اسیدها، در شکلگیری نهایی این مولکول نقش مهمی ایفا میکند. نوکلئوئیک اسیدها، چهار کنفورماسیون اصلی از مارپیچ دوتایی دارند که تفاوت آنها در قطر هلیکسی است که تشکیل شده میدهند.
- A-DNA: دو رشته موازی در جهت مخالف و مارپیچ راستگرد
- B-DNA: دو رشته موازی در جهت مخالف و مارپیچ راستگرد (مل واتسون کریک)
- Z-DNA: دو رشته موازی در جهت مخالف و مارپیچ چپگرد
- A-RNA: بخشی از RNA - دو رشته موازی در جهت مخالف و مارپیچ راستگرد
ساختارهای شاخهای
این ساختارهای موقتی در هر دو نوکلئیک اسید به دو شکل حضور دارند.
- ساختارهای «صلیبی» (Cruciforms): ساختارهای درون مولکولی
- «ساختارهای هالیدی» (Holliday Junctions): ساختارهای بین دو مولکول - دخیل در نوترکیبی
حلقههای برآمده
ساختارهای چهاروجهی
ساختار سوم نوکلئوئیک اسیدها
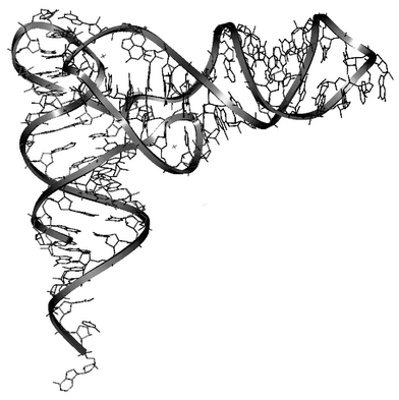
- سرچکشی: از سه دومین دو رشتهای تشکیل شده است که بهوسیله بخشهای تکرشتهای بهم متصل میشوند. توالی بازی این بخشها کاملا حفظشده است.
- سنجاقسری: این ساختار از دو دومین A و B تشکیل میشود و دو طرف هر دومین ساختار هلیکس وجود دارد. تاشدگی این دومینها مجزا است اما برهمکنش ساختار سهبعدی آنها بر عملکردی بودن کنفورماسیون این ریبوزیم تاثیر میگذارد.
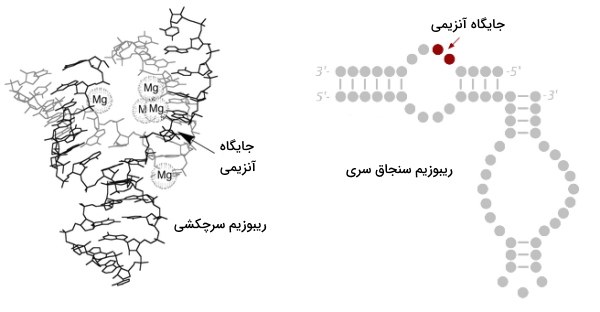
نکته: موتیف گروهی از ساختارهای دوم یک ماکرومولکول و دومین واحد عملکردی آن است.
DNA فراپیچش
آنالیز کنفورماسیون مولکولهای زیستی
بیشترین عملکرد موجودات زنده به کمک پروتئینها انجام میگیرد. برای اینکه عملکرد کامل یک پروتئین مثلا فسفوریلاز در فسفوریلاسیون را متوجه شویم، به اطلاعات در مورد ساختار بیوشیمیایی این مولکول نیاز داریم. در این بخش روشهایی برای تعیین کنفورماسیون پروتئینها و نوکلئوئیک اسیدها را شرح میدهیم.
- «پراش پرتو ایکس» (Diffraction of X-ray)
- رزونانس مغناطیسی هسته (Nuclear Magnetic Resonance|NMR)
پراش پرتو X
پیشبینی ساختار دوم پروتئین بهکمک توالی آمینواسیدی و ساختار نوکلئوئیک اسیدها بهکمک بازهای آلی آن امکان پذیر است. اما امکان پیشبینی ساختار سوم پروتئین تنها در صورتی فراهم میشود که عملکرد آن بسیار شبیه مولکولی باشد که ساختار سهبعدی آن از قبل مشخص شده است. یکی از معمولترین روشهایی که برای تعیین ساختار سهبعدی مولکولها بهکار میگیریم، روش پراش پرتو X است. در این روش مراحل زیر انجام میشود.
- پرتو باریک X را به مولکول پروتئین یا نوکلئیک اسید خالص میتابانیم.
- بیشتر پرتوها از مولکول عبور میکنند و بخش کمی از آنها، بهوسیله اتمهای موجود در مولکول پراکنده میشوند.
- اگر نمونه مورد مطالعه، کامل کریستاله شده باشد، پرتوهای پراکنده شده در یک نقطه یکدیگر را تقویت میکنند.
- نقاط تقویتشده توسط آشکارساز ضبط و نشان داده میشوند.
رزونانس مغناطیسی هسته
روش داکینگ و پیشبینی تغییر کنفورماسیون پروتئین
- پیشبینی کنفورماسیون لیگاند و تغییر آن در جایگاه اتصال
- ارزیابی تمایل اتصال بین لیگاند و رسپتور

جمعبندی
مولکولهای زیستی از سطوح مختلف ساختاری تشکیل شدهاند که شناخت آنها اساس زیست شناسیمولکولی را تشکیل میدهد. ساختار اولیه این مولکولها شامل نوع و توالی زیرواحدها میشود که در ساختارهای بعدی و جهتگیری فضایی مولکول بسیار موثر است. کنفورماسیونهای مختلف یک مولکول زیستی مربوط به ساختارهای سهبعدی آن است که در برهمکنش با دیگر مولکولها تغییر میکند و عملکرد مولکول را نیز تغییر میدهد.
مطالب مجله فرادرس را در جستجوی گوگل سریعتر ببینید